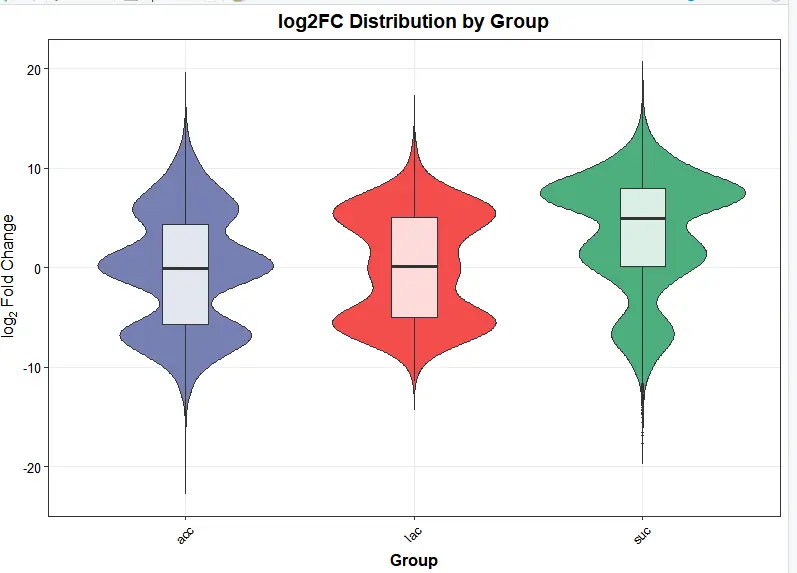
三个不同修饰组或处理组(acc: 乙酰化 Acetylation; lac: 乳酰化 Lactylation; suc: 琥珀酰化 Succinylation)中蛋白质或修饰位点的 Fold Change () 分布情况。
从蛋白组与修饰组学的专业角度来看,这幅图传达了以下几个核心生物学意义:
1. 不同修饰类型的整体调控趋势
- acc (乙酰化) 与 lac (乳酰化): 这两个组的中位数(箱线图中间的黑横线)基本位于 0 刻度线附近,且分布相对对称。这表明在当前的研究模型中,乙酰化和乳酰化在整体水平上处于稳态调控,上调和下调的位点数量及幅度大致相当。
- suc (琥珀酰化): 明显看到绿色区域的中心整体上移,中位数显著高于 0。这反映了在该生物样本中,琥珀酰化呈现出强烈的整体上调趋势。这可能暗示细胞内存在琥珀酰辅酶 A (Succinyl-CoA) 的积累,或是去琥珀酰化酶(如 SIRT5)活性受抑制,导致了全蛋白水平的琥珀酰化水平升高。
2. 修饰组的异质性与响应强度
- 分布宽度(Violin Width): 每个“小提琴”的胖瘦代表了在该 值的位点密度。
- 三个组在 0 附近都最宽,说明大部分位点变化不显著。
- suc 组在正值区域(上调方向)的面积明显大于负值区域,说明其对处理因素的响应比其他两种修饰更为剧烈且一致。
3. 生物学功能与代谢耦联
- 能量代谢的偏向性: 乙酰化、乳酰化和琥珀酰化都属于酸酰化修饰,且它们的供体(Acetyl-CoA, Lactyl-CoA, Succinyl-CoA)直接来源于糖酵解和三羧酸循环(TCA cycle)。
- suc 的异常上调往往与线粒体功能障碍或 TCA 循环中间产物堆积密切相关。如果这是一个疾病模型(如肿瘤或代谢性疾病),图表可能暗示该因素特异性地冲击了线粒体代谢路径,而非细胞质中的常规乙酰化调控。
总结与进一步分析建议
这幅图告诉我们:琥珀酰化 (suc) 是该实验条件下的核心差异变量。
建议后续分析方向:
- 通路富集 (KEGG/GO): 重点分析 suc 组中显著上调的蛋白,看是否集中在线粒体代谢酶。
- 位点重叠分析: 检查同一蛋白上是否存在多种修饰(Crosstalk)。例如,同一个赖氨酸位点是否由 acc 变为了 suc。
- 修饰酶鉴定: 结合转录组数据,查看对应的酰基转移酶和去酰化酶的表达水平,解释为何 suc 会整体上调。
在蛋白质组学研究中,位点重叠分析(Crosstalk / Overlap Analysis) 是研究不同修饰之间相互作用的核心方法。由于各种酰化修饰(如乙酰化、乳酰化、琥珀酰化)通常都发生在赖氨酸(Lysine, K)残基上,它们之间存在天然的“竞争”或“协作”关系。
通过分析这些修饰位点在空间上的重叠情况,通常可以说明以下四个层面的生物学问题:
1. 竞争性占位(Competitive Occupancy)
这是最直接的解释。如果一个赖氨酸位点同时被发现可以发生乙酰化(acc)和琥珀酰化(suc),说明这两个修饰在争夺同一个“底座”。
- 生物学意义: 这种竞争往往意味着一种开关切换。例如,正常生理状态下该位点是乙酰化的,但在代谢压力下(如 Succinyl-CoA 堆积),琥珀酰化占据了该位点,从而改变了蛋白质的功能、稳定性和定位。
2. 功能协同与代谢代偿
如果某一条代谢通路(如 TCA 循环)中的酶在多个相同或相邻位点上同时出现了多种修饰的同步变化:
- 生物学意义: 这说明该通路受到了多重代谢压力的协同调控。
- 代偿机制: 有时一种修饰的减少伴随着另一种修饰的增加,这可能是一种细胞的防御或代偿机制,用于维持蛋白质在不同代谢环境下的电荷平衡或结构稳定性。
3. 修饰“语言”的复杂性(PTM Code)
类似于组蛋白密码(Histone Code),位点重叠分析能揭示蛋白质表面的“组合拳”:
- 空间邻近性: 即使不是同一个位点,如果 acc 位点和 suc 位点在空间结构上靠得很近,它们可能会共同影响蛋白质的构象。
- 分级调控: 某些修饰(如磷酸化)可能会成为另一种修饰(如乙酰化)的前提条件。位点重叠分析有助于建立这种时间序列上的调控链条。
4. 关键调控“热点”蛋白质的鉴定
通过 Venn 图或 UpSet 图,你会发现某些蛋白质拥有极高比例的重叠位点。
- 生物学意义: 这些蛋白通常是细胞内的核心枢纽(Hub Proteins),如组蛋白、热休克蛋白或关键代谢酶(如 GAPDH, LDH)。
- 科研价值: 发现这些高度重叠的“热点”位点,是后续进行**定点突变(Site-directed mutagenesis)**实验(如 K 转 R 或 K 转 Q/E)的首选目标,具有极高的发文价值。
常用分析展示方式
| 分析手段 | 目的 |
|---|---|
| Venn 图 / UpSet 图 | 统计有多少个位点/蛋白是共有修饰,有多少是特有修饰。 |
| 序列 Motif 分析 | 比较重叠位点前后的氨基酸序列特征,判断是否由同一种酶催化。 |
| 3D 结构映射 | 将重叠位点标注在蛋白 PDB 结构上,观察其是否位于活性中心或结合口袋。 |
简而言之,位点重叠分析能帮你从“单个修饰的孤立变化”,升华为“多组学背景下的整合调控机制”,解释细胞如何通过修饰的动态切换来响应复杂的代谢环境。
针对你刚才那张图,如果 suc 显著上调而 acc 平稳,位点重叠分析能立刻告诉你:究竟是由于新的位点发生了琥珀酰化,还是原有的乙酰化位点被琥珀酰化“截胡”了?这将直接决定你后续的研究故事方向。
“suc 的大爆发,是因为负责 suc 的那种特定的酶活性疯长了(会有很明显的特异性 Motif),还是因为细胞内琥珀酰辅酶 A 浓度太高,导致它不分青红皂白地到处乱贴(Motif 会非常模糊、随机)?”
解释2
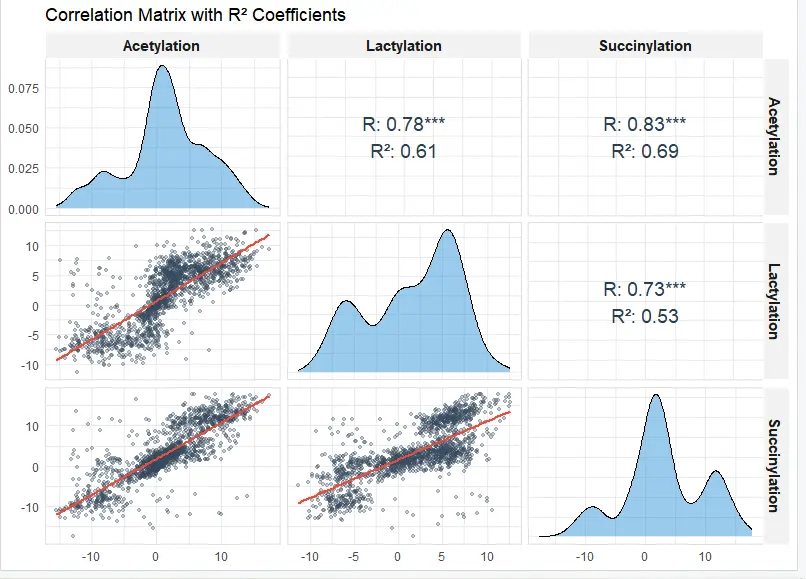
1. 代谢通路的“同频共振”
这三种修饰的供体(Donor)全部来源于核心代谢产物:
- Acetylation: 来自 Acetyl-CoA(糖酵解/TCA中间体)
- Lactylation: 来自 Lactyl-CoA(糖酵解产物乳酸的衍生物)
- Succinylation: 来自 Succinyl-CoA(TCA循环关键中间体)
生物学意义: 散点图呈现出明显的线性趋势,说明当细胞的整体代谢水平(尤其是糖代谢和 TCA 循环)波动时,这三种修饰会同步发生响应。这反映了细胞内“代谢流”对“修饰组”的决定性影响——即底物浓度越高,修饰水平整体随之抬升。
2. 修饰位点的广泛交叉(Crosstalk)与底物竞争
图中极高的相关系数(尤其是 Acetylation 与 Succinylation 的 )暗示了它们之间存在大量的位点重叠。
- 物理层面:许多赖氨酸位点(K)既可以被乙酰化,也可以被琥珀酰化。
- 生物学意义:这种高度相关性表明,这些修饰并不是孤立发生的,而是在蛋白质表面形成了一种“酰化图谱”。当一个蛋白的某个位点环境变得容易被酰化(例如局部 pH 变化或蛋白质构象改变),多种酰基供体可能同时对其进行修饰。
3. 非酶促反应的潜在贡献
在修饰组学中,如果几种不同的修饰表现出如此步调一致的线性关系,往往暗示其中存在**非酶促(Non-enzymatic)**成分。
-
琥珀酰辅酶 A 和乙酰辅酶 A 本身具有化学活性。
-
结论:如果这种相关性在全蛋白水平上普遍存在,可能意味着细胞内的代谢压力(辅酶 A 浓度过高)导致了化学性质相似的酰化修饰在全细胞范围内的“被动”增加,而不仅仅是某种特定转移酶(Transferase)的精准调控。·
  	化学驱动力:酰基辅酶 A 的“亲核攻击”
  	从化学本质上讲,赖氨酸(K)侧链的氨基是一个亲核试剂,而各类酰基辅酶 A(如 Acetyl-CoA, Succinyl-CoA)的硫酯键具有很高的反应活性。

  	酶促反应:像是一个“命题作文”,转移酶(如 HATs)会精准地把酰基搬运到特定的蛋白质位点上。

  	非酶促反应:更像是“大雨倾盆”,只要环境中的酰基辅酶 A 浓度达到一定阈值,且局部 pH 环境允许(碱性环境会促进氨基去质子化),酰基就会自发地转移到蛋白质的赖氨酸上。

  	1. 为什么相关性这么高?
  	如果修饰是靠“酶”来精准调控的,不同修饰的转移酶往往受不同信号通路的影响,它们的分布通常是不对称、不相关的。

  	但当非酶促反应占主导时,所有酰化修饰共用一套“逻辑”:

  	浓度决定论:只要 Acetyl-CoA 和 Succinyl-CoA 都在线粒体等局部空间堆积,它们会根据各自的化学浓度比例,以几乎恒定的比例“贴”在暴露的赖氨酸位点上。

  	位点暴露度:非酶促反应更倾向于攻击蛋白质表面那些暴露程度高、pKa 值低的位点。既然位点是同一批蛋白,那么不同修饰在这些位点上的同步增长就形成了你在相关性矩阵中看到的高度线性关系。

  	2. 线粒体:非酶促反应的“重灾区”
  	你图中的高相关性,极大概率反映了线粒体蛋白的状态。

  	线粒体内的基质 pH 值较高(约 8.0),这大大增强了赖氨酸残基的亲核性。

  	线粒体是各种酰基辅酶 A 的生产核心,局部浓度极高。

  	生物学解释:如果你观察到 suc 与 acc 如此步调一致,说明该实验条件下,线粒体的代谢负载可能已经超标,导致了辅酶 A 的“溢出效应”,这种“被动修饰”可能导致线粒体代谢酶的功能广泛受损。

  	1. 非酶促修饰的“病理学意义”
  	这种“步调一致”的修饰增加,往往不是细胞主动想要的“信号传导”,而更像是一种**“化学损伤”**,类似于糖基化终产物(AGEs):

  	蛋白质质量控制压力:这种大面积、非特异性的修饰会改变蛋白的电荷性质(比如琥珀酰化会将赖氨酸从 +1 电荷变为 -1 电荷),导致蛋白折叠异常或失活。

  	去修饰酶的过载:细胞虽然有去乙酰化酶(如 Sirtuins),但面对这种全蛋白水平的、不分位点的“狂轰滥炸”,去修饰酶可能无法及时清理,最终导致代谢稳态崩盘。
4. 协同调控的生物学“备灾”机制
从功能角度看,这种高度相关性可能是一种功能冗余或协同。
- 例如,当细胞处于应激状态时,通过同时提高这三种修饰,可以更有效地调节代谢酶的活性或染色质的开放程度(组蛋白修饰)。
- 这种同步性确保了细胞在代谢转型(如由氧化磷酸化转向糖酵解,即 Warburg 效应)时,整个蛋白质组能够快速、整体地切换到相应的调节模式。
5. 针对后续分析的提示
- 关注离群点(Outliers):在散点图中,那些偏离红色回归线的点才是“最有意思”的。例如,某个蛋白在乙酰化水平很高时,琥珀酰化水平却极低。这些蛋白可能受到了某种特定酶的特异性调控,通常是关键的生物学开关。
- R² 的解读: 波动在 0.53 到 0.69 之间,意味着一种修饰的变化可以解释另一种修饰约 50%~70% 的变异。剩下的 30%~50% 则来源于每种修饰特有的调节机制(如专一性的去酰化酶 SIRT 家族的选择性)。
一句话总结:这幅图有力地证明了你所研究的生物模型中,代谢通路的重塑是通过多种酰化修饰的“整体协同”来实现的,而非单一修饰的孤立行为。